Leafy Reptiles · 아티클
크레스티드 게코 피부 구조
피부의 색소세포와 콜라겐 구조를 살펴보고, 밝은 패턴의 발생 가설과 현재 근거로 가능한 판정을 정리합니다.
크레스티드 게코의 피부색과 밝은 패턴을 조직학적 근거, 비교종 자료, 검증 가능한 가설로 나누어 살펴봅니다.
수정 피부 모델
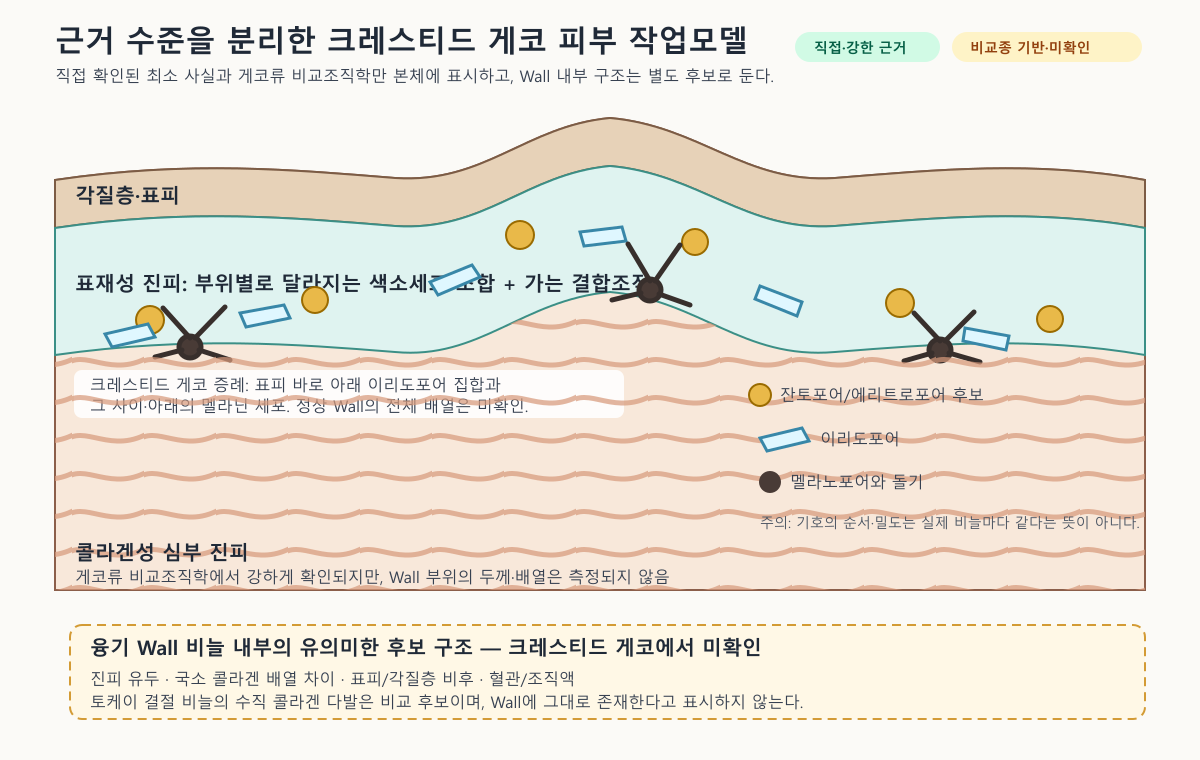
그림 1. 직접 확인된 최소 사실과 게코류 비교조직학을 본체에 표시한 작업모델. 융기 Wall 비늘의 내부 지지구조는 크레스티드 게코에서 확인되지 않았으므로 별도 후보 상자로 분리했다. 실제 정상 Wall 조직절편이 아니다.
이 모델은 피부를 잔토포어층-이리도포어층-멜라노포어층-콜라겐층으로 고정된 네 장의 평면처럼 보지 않는다.
- 색소세포는 표피 아래의 콜라겐성 진피 안에 존재한다.
- 잔토포어·이리도포어·멜라노포어의 순서와 밀도는 부위와 색 영역에 따라 달라질 수 있다.
- 멜라노포어의 돌기는 다른 색소세포 주변과 위쪽까지 뻗을 수 있다.
- 가는 콜라겐망은 표재성 색소세포 사이에도 존재할 수 있다.
- 굵고 조밀한 콜라겐 다발은 대체로 더 깊은 진피에서 우세하다.
- 융기 비늘 아래의 진피 유두, 콜라겐 배열, 표피·각질 비후와 혈관·조직액의 상대적 기여는 미확인이다.
색소세포와 콜라겐의 배치
| 위치 | 주요 구성 | 광학·구조 역할 |
|---|---|---|
| 표피·각질층 | 각질세포, 기저층, α/β-각질층 | 보호, 표면반사, 투과, 비늘 윤곽 |
| 표재성 진피 | 부위에 따라 달라지는 잔토포어/에리트로포어, 이리도포어, 멜라노포어와 돌기, 가는 결합조직 | 색 필터, 구조 반사와 흡수 |
| 융기 중심의 진피 | 크레스티드 게코에서 미확인. 진피 유두·국소 ECM·표피 비후 등이 후보 | 실제 조직절편이 필요함 |
| 심부 진피 | 굵고 조밀한 콜라겐 다발과 결합조직 | 기계적 지지, 조건부 광대역 산란 |
게코류의 실제 조직학
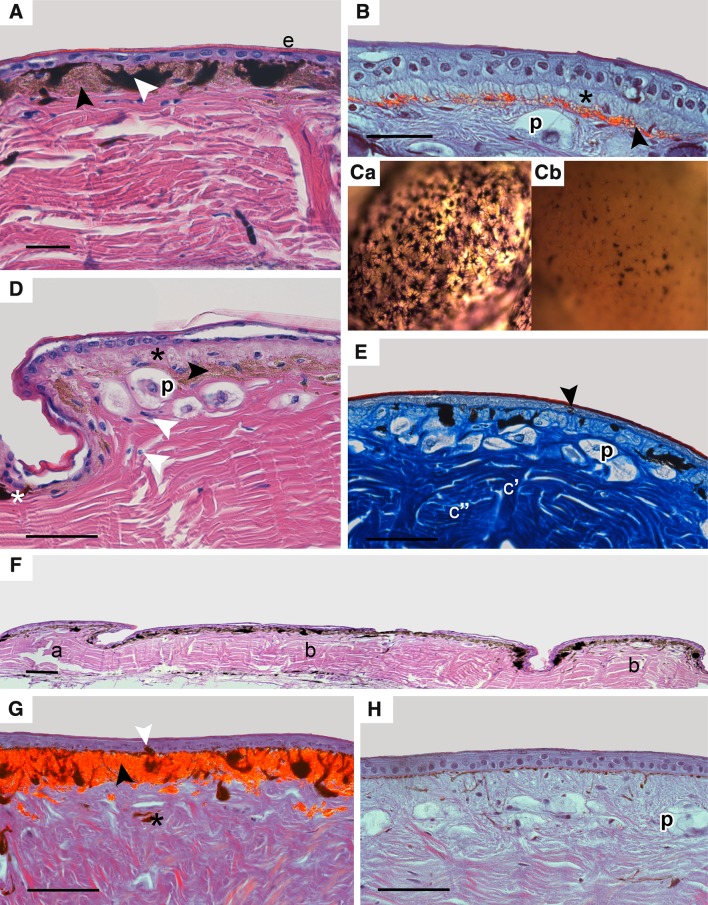
그림 2. 토케이 게코 피부. 표피 바로 아래의 색소세포와 결절형 비늘의 서로 다른 방향 콜라겐 다발을 보여 준다. Szydłowski et al. 2017, Fig. 2, CC BY 4.0, 원문, 원본 변경 없음.
토케이 게코에서는 다음이 같은 연구에서 관찰되었다.
- 청색 영역의 이리도포어가 표피 바로 아래에 위치한다.
- 적색·주황 영역에서는 에리트로포어와 이리도포어의 배치가 달라진다.
- 멜라노포어는 색 영역에 따라 수와 돌기 분포가 다르다.
- 결절형 비늘은 평평한 중첩 비늘과 다른 콜라겐 배열, 특히 다수의 수직 다발을 가진다.
그러나 이는 토케이 게코의 자료이며 크레스티드 게코 Quad·Porthole의 직접 조직학은 아니다.
다른 파충류의 실제 볏에서 확인된 콜라겐 지지
투아타라(Sphenodon punctatus)의 등 볏 비늘을 광학·전자현미경으로 조사한 연구에서는 볏 내부의 진피가 드문 섬유세포와 이를 둘러싼 콜라겐 다발로 구성되며, 다발은 비교적 불규칙하게 배열된다고 보고했다. 저자들은 투아타라의 유연한 볏이 단단하지만 유연하고 덜 조밀한 진피에 의해 주로 지지된다고 결론내렸다. 반면 꼬리의 더 단단한 융기 가시는 collagen I 다발이 규칙적인 직교 배열을 보였다. 같은 동물에서도 융기의 기능과 강성에 따라 콜라겐의 밀도와 방향이 달라질 수 있다는 직접 근거다. 이 연구는 볏의 희끄무레한 색은 진피 이리도포어에서 기원할 가능성이 높다고 해석했으므로, 콜라겐=색이 아니라 콜라겐성 지지구조와 이리도포어 색이 같은 볏에 공존한 사례다. (Alibardi & Meyer-Rochow, 2020)
아놀도마뱀(Anolis sagrei, A. carolinensis)의 가변적 등 볏을 조사한 예비 조직학에서는 피하의 캡슐화된 crest organ이 조직액 증가로 팽창하고, 수평에 가깝게 배열된 것으로 보이는 콜라겐 섬유가 세워진 볏의 형태를 유지한다고 보고했다. 다만 이는 학술대회 초록 수준이므로 보조 근거로만 사용한다. (Ficklin et al., 2015)
따라서 다른 파충류의 실제 볏과 융기 비늘에 콜라겐 다발이 포함될 수 있다는 비교 근거는 있다. 그러나 다발 방향과 기능은 구조마다 다르며, 이 자료로 크레스티드 게코 Wall의 내부 조직을 특정할 수는 없다. 토케이 결절 비늘의 수직 다발도 가장 가까운 비교 후보일 뿐이다.
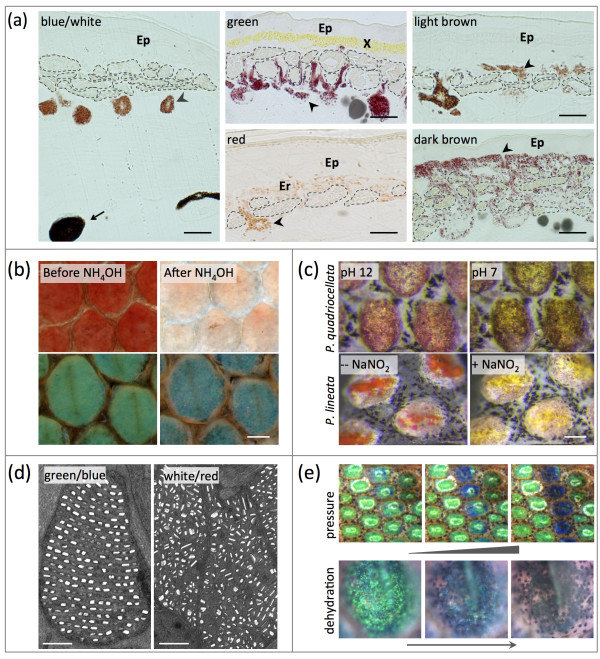
그림 3. 여러 Phelsuma 게코의 색 영역별 색소세포 배치와 이리도포어 구아닌 구조. Saenko et al. 2013, Fig. 2, CC BY 2.0, 원문, 원본 변경 없음.
Phelsuma 연구는 흰색·적색·녹색·갈색 피부에서 잔토포어/에리트로포어, 이리도포어와 멜라노포어의 밀도·위치가 달라질 수 있음을 보여 준다. 백색·적색 영역에서는 녹색·청색 영역보다 구아닌 결정이 더 무질서하게 배열된 사례도 관찰되었다.
크레스티드 게코 자체의 생검 증례에서는 복굴절성 이리도포어 집합이 상피 바로 아래의 가장 표재성 진피에 주로 놓였고, 멜라노사이트가 그 사이 또는 바로 아래에서 관찰되었다. 다만 복부 변색 증례 한 사례이므로 정상 몸통 측면의 보편적 구조로 확대 해석할 수 없다.
백색·크림색·밝은 황색의 생성
관찰색은 하나의 세포층이 단독으로 만드는 결과가 아니다. 아래 식은 가능한 광학 요소를 나열한 것이며, 크레스티드 게코 Wall에서 각 항의 기여도가 측정됐다는 뜻은 아니다.
표피 투과·곡률 × 상부 색소 필터 × 이리도포어 반사·산란 × 콜라겐 산란 × 멜라닌 차폐
잔토포어·에리트로포어
노랑·주황·적색 계열 색소가 아래에서 되돌아온 빛을 여과한다. 같은 이리도포어 반사도 상부 황색소의 양에 따라 순백색, 크림색 또는 밝은 노란색으로 달라질 수 있다.
이리도포어
이리도포어는 흰색 물감을 담는 세포가 아니라 구아닌 결정의 크기·간격·방향·질서도로 반사 스펙트럼을 바꾸는 구조색 세포다.
- 무질서한 결정과 세포 집합: 넓은 파장대의 산란과 백색·은색에 기여 가능
- 규칙적인 다층 구조: 특정 파장의 강한 반사에 기여 가능
- 성장 중 결정의 성숙·재배열: 색조와 반사 강도 변화 가능
- 이리도포어 수의 성장성 감소: 일부 게코에서 밝은 밴드 소실과 연결
멜라노포어
멜라닌은 빛을 흡수한다. 멜라노솜이 돌기 전체에 분산되면 이리도포어와 더 깊은 콜라겐의 반사광이 차폐되어 어두워지고, 세포 중심에 응집되면 상대적으로 밝아질 수 있다.
멜라노포어의 돌기가 콜라겐을 한 장의 막처럼 덮는 것은 아니다. 그러나 표재성 경로에 분포한 멜라닌은 그 아래에서 올라오는 산란광을 광학적으로 가릴 수 있다.
콜라겐
콜라겐은 색소세포와 분리된 독립적인 흰 판이 아니라 진피 기질이다. 원리상 깊은 콜라겐에서 산란된 빛이 표면으로 돌아올 수 있지만, 크레스티드 게코 Wall에서 그 기여도는 측정되지 않았다.
다만 콜라겐이 많음 = 항상 더 희게 보임은 성립하지 않는다.
| 변수 | 가능한 광학 효과 |
|---|---|
| 광학적 두께 증가 | 산란 기회 증가 가능 |
| 불규칙한 섬유 굵기·간격 | 광대역 산란 증가 가능 |
| 특정한 부분질서 | 산란 상쇄와 투명성 증가 가능 |
| 수분과 굴절률 일치 | 산란 감소 가능 |
| 표재성 멜라닌 증가 | 깊은 콜라겐 산란광 차폐 |
파충류에서 콜라겐망과 백색을 연결한 대표적인 관찰 사례는 볼파이톤과 표범게코다. 볼파이톤의 야생형 복부 백색과 piebald 백색 반점에서는 이리도포어가 검출되지 않았고 조밀한 콜라겐 섬유가 관찰됐다. 표범게코 성체의 배쪽 백색 절편에서도 크로마토포어가 검출되지 않고 콜라겐 섬유만 보고됐다. 연구자들은 이 백색을 콜라겐 산란으로 해석했다. (Tzika, 2024; Ullate-Agote & Tzika, 2024)
다만 두 연구 모두 색 부위별 콜라겐량·배열·반사율을 정량하거나 콜라겐을 조작해 인과를 시험하지 않았다. 따라서 직접 관찰된 것은 백색 절편에서 크로마토포어가 검출되지 않고 콜라겐성 진피가 남아 있었다까지다. 콜라겐 산란은 타당한 해석이지만, 콜라겐 과증식이 백색 무늬의 위치와 밝기를 만들었다는 명제는 아니다.
따라서 콜라겐은 크레스티드 게코 백색의 주원인으로 두지 않는다. 일반 진피 구성요소이자 조건부 산란 후보로만 취급한다.
융기 비늘과 밝은색의 분리
육안상 밝고 튀어나온 비늘에는 최소 두 현상이 겹쳐 있다.
구조축
- 표피와 각질층 두께
- 비늘의 표면 곡률
- 진피 유두의 높이
- 국소 수직·교차 콜라겐 다발
- 혈관, 세포와 조직액
관찰색 축
- 이리도포어 수·두께·구아닌 배열
- 잔토포어·에리트로포어의 색소량
- 멜라노포어와 멜라노솜의 분포
- 표피와 진피 기질의 광학 특성
구아닌 결정은 세포 안의 나노미터 규모 반사체다. 정상적인 결정 재배열만으로 육안상 비늘 돌기를 직접 밀어 올린다는 근거는 없다. 또한 평평한 비늘의 관찰색도 성장 중 달라질 수 있으므로 융기는 밝은색의 필수조건이 아니다. 그 세포기전은 아직 특정할 수 없다.
따라서 성장 기록에서는 다음 세 값을 따로 센다.
- 밝은 비늘 수
- 실제 융기 비늘 수
- 밝음과 융기가 겹치는 비늘 수
성장과 비늘 단위 관찰색 변화
크레스티드 게코 사진에서 판정 가능한 것
동일 개체의 성장 전후 사진을 비늘 단위로 대응시키면 다음을 구분할 수 있다.
- 기존 비늘 자체의 면적 증가
- 기존 비늘의 밝기·색조 변화
- 밝게 판정되는 기존 비늘 수의 증가
- 밝은 단위들이 연결되며 생기는 총면적 증가
- 기존 융기 비늘의 위치·수·높이 변화
사진만으로는 이리도포어 이동, 구아닌 결정 재배열, 잔토포어 감소, 멜라노포어 수축 또는 콜라겐 변화 중 어느 과정이 일어났는지 판정할 수 없다. 따라서 이 문서에서 색 상태 변화는 우선 관찰색이 달라졌다는 표현형 기술로 사용한다.
다른 파충류에서 확인된 비교 사례
오셀레이티드리자드(Timon lepidus)에서는 약 4년간의 반복 촬영으로 기존 비늘이 녹색과 검은색 사이에서 전환하고, 전환 확률이 이웃 비늘 상태에 의존한다는 사실이 확인됐다. 실제 피부 형상을 이용한 후속 계산 연구에서는 비늘의 3차원 두께 차이가 연속적인 반응-확산장을 비늘 단위로 분절하기에 충분했다.
이 자료는 새 비늘이나 융기 없이 기존 비늘의 색이 바뀔 수 있음을 직접 지지한다. 그러나 크레스티드 게코의 백색 확대가 같은 세포·분자기전이라는 뜻은 아니다. 살아 있는 도마뱀에서 비늘 경계 두께를 조작한 실험도 없고, 오셀레이티드리자드에서 이웃 비늘 사이를 전달하는 물질도 동정되지 않았다.
현재 증거 수준
| 명제 | 판정 |
|---|---|
| 크레스티드 게코 표재성 진피에 이리도포어 집합과 멜라닌 세포가 존재할 수 있음 | 직접 자료 — 복부 변색 증례의 세 절편 |
| 정상 Wall의 색소세포 배열 | 미확인 |
| 게코류에서 색 영역마다 색소세포 배열과 구아닌 구조가 달라짐 | 강한 비교자료 — 토케이·Phelsuma·표범게코 |
| 토케이 결절 비늘에 수직 콜라겐 다발이 존재함 | 직접 비교자료 |
| 크레스티드 게코 Wall 비늘에도 같은 다발이 존재함 | 미확인 |
| 투아타라 볏에 콜라겐 다발이 포함됨 | 직접 비교자료 |
| 일부 파충류 백색 절편에서 크로마토포어가 검출되지 않고 콜라겐성 진피가 남음 | 직접 관찰 |
| 그 백색이 콜라겐 산란으로 생김 | 타당한 해석이나 직접 인과시험 없음 |
| 크레스티드 게코 Wall의 백색이 콜라겐에서 생김 | 미확인 |
| 기존 비늘의 관찰색이 성장 중 달라질 수 있음 | 사진으로 판정 가능; 다른 도마뱀에서 직접 확인 |
| 크레스티드 게코에서 이리도포어·잔토포어가 이웃 비늘로 전파됨 | 미확인 |
| 융기 Wall이 주변 색 변화의 조직자임 | 미확인 |
유의미하지만 아직 검증되지 않은 설명은 유의미한 가설에서 별도로 비교한다.
유의미한 가설
아래 가설은 본문에서 확인된 사실이 아니다. 비교종 자료와 현재 성장 관찰을 설명할 수 있고, 서로 다른 측정 결과를 예측한다는 이유로 유지한다. 우선순위는 현재 자료와의 양립성과 불필요한 추가 가정의 수를 기준으로 정했다.
백색의 표재성 크로마토포어 조합 가설
백색·크림색·밝은 황색의 차이는 이리도포어 반사, 잔토포어·에리트로포어 필터와 멜라노포어 차폐의 지역별 조합에서 주로 생긴다는 가설이다.
- 근거: 여러 게코에서 색 영역마다 세포 수·깊이와 구아닌 구조가 다르다.
- 장점: 순백색, 크림색과 황색이 인접 비늘에 공존하는 현상을 하나의 광학 틀에서 설명한다.
- 미확인: 정상 크레스티드 게코 Wall의 실제 세포 구성.
- 지지 결과: 순백색 비늘에서 황·적색 색소가 적고 광대역 반사 이리도포어 또는 낮은 멜라닌 차폐가 확인됨.
- 반박 결과: 색소세포 구성은 같고 표피·콜라겐 구조만 백색도와 대응함.
현재 우선순위: 높음. 다만 어떤 색소세포가 실제 주도하는지는 특정하지 않는다.
기존 비늘의 국소 광학 상태 변화 가설
성장하면서 새로운 구조 단위가 생기기보다 기존 비늘의 세포·색소·광학 상태가 달라져 밝게 판정되는 비늘 수가 증가한다는 가설이다.
- 근거: 성장 사진에서 동일 위치의 기존 비늘이 대응되고, 다른 도마뱀에서는 기존 비늘의 색 전환이 직접 확인됐다.
- 가능한 경로: 이리도포어 성숙·수 변화·구아닌 재배열, 잔토포어 색소 변화, 멜라노포어 수·멜라노솜 분포 변화, 표피 광학 변화.
- 미확인: 크레스티드 게코에서 실제로 변하는 세포와 분자.
- 지지 결과: 연속 절편에서 새 구조 융기 없이 밝아진 평면 비늘의 색소세포 또는 반사 스펙트럼이 달라짐.
현재 우선순위: 높음인 현상 모델. 세포기전 모델은 아니다.
Quad·Porthole 공통 위치정보 가설
Porthole의 단속된 밝은 단위와 Quad의 연속 측면선이 공통된 측면 위치정보 위에서 연속성 정도만 다르게 표현된다는 가설이다.
- 근거: 같은 높이에서 국소형·점열형·부분선형·연속선형 외형이 반복된다. 다른 파충류에도 끊긴 확대 비늘열이 존재한다.
- 미확인: 동일 유전자, 동일 발생세포 또는 직접 상동성.
- 지지 결과: 교배 자료에서 Porthole과 Quad 연속성이 함께 분리되거나, 배아에서 같은 측면 발생영역이 확인됨.
- 반박 결과: 두 형질이 교배에서 독립적으로 분리되고 조직 구성도 다름.
현재 우선순위: 중간. 외형 분류에는 유용하지만 발생기전은 미확인이다.
융기 비늘의 국소 진피·표피 지지 가설
융기 Wall 비늘에는 평면 비늘과 다른 진피 유두, 국소 ECM 배열 또는 표피·각질 비후가 존재한다는 가설이다.
- 근거: 토케이 결절 비늘의 수직 콜라겐 다발, 아가마류 유두성 비늘, 투아타라 볏과 clemmysian fold에서 국소 진피 구조 차이가 확인됐다.
- 미확인: 크레스티드 게코 Wall에서 어떤 조직이 실제로 다름.
- 지지 결과: 융기·평면 비늘의 연속절편에서 진피 유두, 콜라겐 배열 또는 표피 두께 차이가 반복됨.
- 주의: 토케이의 수직 다발은 후보 중 하나이며 Wall의 기본구조로 확정하지 않는다.
현재 우선순위: 중간. 융기의 기계적 설명 후보이며 색의 원인과는 분리한다.
공위치한 국소 조직자·이웃 상호작용 가설
융기선 자체 또는 그와 같은 위치에 있는 표재성 세포 구역이 주변 비늘의 밝아질 확률에 영향을 준다는 가설이다.
- 근거: 오셀레이티드리자드에서 이웃 비늘 상태와 전환 확률이 연관되고, 어류에서는 색소세포 간 접촉·분비 신호가 직접 확인됐다.
- 미확인: 크레스티드 게코에서 전달 신호, 세포 이동 또는 이웃 의존성.
- 지지 결과: 시간순서 분석에서 중심에 가까운 비늘부터 거리 의존적으로 변화하고, 절편·분자자료에서 후보 신호 구배가 확인됨.
- 반박 결과: 밝은 확대 순서가 중심과 무관하거나 전신적인 성숙 시점만으로 설명됨.
현재 우선순위: 중간 이하. 형태적으로 흥미롭지만 직접 자료가 없다.
콜라겐의 조건부 백색 산란 가설
색소세포가 적거나 상부 흡수가 낮은 부위에서 진피 콜라겐이 밝기·불투명도에 기여한다는 가설이다.
- 근거: 볼파이톤과 표범게코의 일부 백색 절편에서 크로마토포어가 검출되지 않고 콜라겐성 진피가 관찰됐다.
- 한계: 콜라겐량·배열·반사율의 정량 대응과 조작실험이 없다.
- 지지 결과: 크레스티드 게코에서 색소세포를 통제한 뒤에도 콜라겐 면적분율·SHG 구조와 백색 반사율이 대응함.
- 반박 결과: 백색·비백색 부위의 콜라겐 구조는 같고 크로마토포어 차이만 존재함.
현재 우선순위: 보조 가설. Wall 백색의 기본 원인이나 경계 결정자로 사용하지 않는다.
보바의 전신적 ECM·고콜라겐 가설
보바 계보의 두껍고 밝은 외관이 전신 또는 넓은 피부영역의 ECM 발달 증가와 연결된다는 가설이다.
- 지지 예측: 밝고 어두운 부위 모두에서 진피 두께, 콜라겐 면적분율·다발 굵기와 피부 강성이 대조군보다 높음.
- 반박 예측: 진피·콜라겐은 같고 표피, 비늘 곡률 또는 이리도포어만 다름.
- 최소 설계: 연령·성별·체중을 맞춘 보바·비보바에서 OCT, 표면 프로필, 분광반사, SHG와 조직학을 비교.
현재 우선순위: 탐색 가설. 외형 관찰 외의 직접 근거가 없다.
콜라겐 장벽 가설
조밀한 국소 콜라겐 구조가 세포 이동 또는 큰 분자의 측방 확산을 낮출 수 있다는 가설이다.
- 근거: 정렬 콜라겐 겔과 종양 조직에서 확산 이방성이 측정됐다.
- 핵심 한계: Wall의 다발 구조, 밀도, 깊이와 실제 색소 신호 경로가 모두 미확인이다.
- 반박 가능성: 색소세포 신호가 더 얕은 진피로 우회하거나 콜라겐 공극보다 작은 분자라면 장벽 효과가 작다.
현재 우선순위: 낮음. 크레스티드 게코 색 확장의 기본 설명에서 제외한다.
강한 근거 중심 최종 판정
| 대상 | 현재 말할 수 있는 것 | 아직 말할 수 없는 것 |
|---|---|---|
| 정상 피부 | 표피 아래 콜라겐성 진피와 색소세포가 존재하는 파충류·게코 기본구조 | 정상 Wall의 정확한 세포 순서·밀도·3차원 배열 |
| 백색 | 이리도포어성 백색과 크로마토포어가 거의 없는 콜라겐성 백색 사례가 모두 존재 | 크레스티드 게코의 순백색이 어느 경로인지 |
| 융기 Wall | 밝은 선과 실제 표면 융기는 별도 변수 | 융기 내부의 수직 콜라겐 다발 또는 특정 지지조직 |
| 성장성 Wall 확대 | 밝게 판정되는 기존 비늘과 연결 면적이 증가할 수 있음 | 이리도포어 이동·잔토포어 감소·구아닌 재배열 등 구체 기전 |
| Quad·Porthole | 같은 측면 높이에서 단속형과 연속형 외형이 존재 | 동일 유전자·동일 발생기전·상동 구조 |
| 보바 라인 | 두껍고 밝은 Wall로 관찰되는 계보 표현 | 실제 고콜라겐·두꺼운 진피 여부 |
최종 원칙: 외형상 밝은 면적, 실제 표면 융기, 크로마토포어 구성과 콜라겐 구조를 독립적으로 측정하기 전에는 하나의 원인으로 묶지 않는다. 현재 크레스티드 게코 백색의 우선 연구대상은 색 영역별 크로마토포어 구성과 반사 스펙트럼이며, 콜라겐은 동시에 측정해야 할 진피 변수이지 미리 확정할 주원인이 아니다.
참고문헌
- Gyimesi ZS, et al. (2020). Benign dermal iridophore aggregates in a crested gecko (Correlophus ciliatus). Journal of Exotic Pet Medicine 35. DOI
- Szydłowski P, Madej JP, Mazurkiewicz-Kania M. (2017). Histology and ultrastructure of the integumental chromatophores in tokay gecko skin. Zoomorphology 136. DOI
- Saenko SV, et al. (2013). Precise colocalization of interacting structural and pigmentary elements generates extensive color pattern variation in Phelsuma lizards. BMC Biology 11. DOI
- Zhang G, et al. (2023). Lizards exploit the changing optics of developing chromatophore cells to switch defensive colors during ontogeny. PNAS 120. DOI
- Ullate-Agote A, Tzika AC. (2024). The dynamic behavior of chromatophores marks the transition from bands to spots in leopard geckos. PNAS 121. DOI
- Teyssier J, et al. (2015). Photonic crystals cause active colour change in chameleons. Nature Communications 6. DOI
- Manukyan L, et al. (2017). A living mesoscopic cellular automaton made of skin scales. Nature 544. DOI
- Fofonjka A, Milinkovitch MC. (2021). Reaction-diffusion in a growing 3D domain of skin scales generates a discrete cellular automaton. Nature Communications 12. DOI
- Jahanbakhsh E, Milinkovitch MC. (2022). Modeling convergent scale-by-scale skin color patterning in multiple species of lizards. Current Biology 32.e13. DOI
- Patnaik BK, Kanungo MS. (1972). Age related changes in the solubility of collagen in the bone and skin of the garden lizard, Calotes versicolor. Experimental Gerontology 7. DOI
- Chung MV, et al. (2025). Anatomical and histological analysis of an undescribed cervical skin fold structure in spotted turtles. Scientific Reports 15. DOI
- Stylianopoulos T, et al. (2010). Diffusion anisotropy in collagen gels and tumors: the effect of fiber network orientation. Biophysical Journal 99. DOI
- Erikson A, et al. (2008). Physical and chemical modifications of collagen gels: impact on diffusion. Biopolymers 89. DOI
- Alibardi L, Meyer-Rochow VB. (2020). General and specific microscopic characteristics of the dorsal tail scales and the spines of the crest in the tuatara Sphenodon punctatus. Micron 137. DOI
- Ficklin JA, Gerace ME, Rand MS. (2015). Tissue morphology of the dorsal crest in the lizard genus Anolis. SICB meeting abstract. Abstract
- Tzika AC. (2024). On the role of TFEC in reptilian coloration. Frontiers in Cell and Developmental Biology 12. 볼파이톤 백색부의 이리도포어 부재와 조밀한 콜라겐망을 보고한 연구. DOI